
Co temperatura w ulu mówi o rodzinie pszczelej
Dwa czujniki w tym samym ulu mogą różnić się o dwadzieścia stopni i oba mają rację. Jak pszczoły ogrzewają i chłodzą gniazdo, co kilka stopni różnicy oznacza dla czerwiu, jak rójka i kłąb zimowy widać w danych o temperaturze w ulu i dlaczego do oceny zdrowia rodziny nie wystarczy jeden termometr.
Dwa czujniki w tym samym ulu, w tej samej chwili, mogą różnić się o dwadzieścia stopni i oba mają rację. Temperatura w rodzinie pszczelej jest daleka od jednolitej, a pomiary wykonane jednocześnie w różnych miejscach ula potrafią pokazać duże różnice.
Podstawową jednostką termoregulacji jest rodzina pszczela (Apis mellifera), a nie pojedyncza robotnica. Pojedyncze pszczoły to niewielkie owady, których temperatura ciała silnie zależy od otoczenia, ale potrafią wytwarzać ciepło metaboliczne, uruchamiając mięśnie lotne tułowia, nawet bez latania (Heinrich, 1979; Stabentheiner i in., 2010). Na poziomie rodziny skoordynowane reakcje fizjologiczne i behawioralne wielu robotnic utrzymują w gnieździe czerwiu względnie stałą temperaturę, zwykle około 34 do 36 °C, mimo wahań warunków zewnętrznych (Kleinhenz i in., 2003; Stabentheiner i in., 2021).
Czujnik temperatury nie mierzy, czy rodzina jest „zdrowa” czy „chora”. Mierzy warunki termiczne w jednym konkretnym miejscu złożonego, żywego układu. Żeby zrozumieć, co oznacza odczyt, trzeba najpierw wiedzieć, po co pszczoły regulują temperaturę, jak ta regulacja zmienia się w ciągu sezonu i, co chyba najważniejsze, jak podobne przebiegi temperatury mogą wynikać z zupełnie różnych procesów biologicznych. Zbieranie danych staje się coraz prostsze. Zamiana surowych pomiarów na sensowną interpretację biologiczną życia rodziny pozostaje dużo trudniejsza. To jedno z głównych wyzwań pszczelarstwa precyzyjnego.
Rodzina pszczela jako superorganizm
Rodzinę pszczelą często opisuje się jako superorganizm: wysoko zorganizowany układ biologiczny, w którym tysiące osobników działają jak jedna całość, a nie jak niezależne organizmy (Seeley, 1989; Hölldobler i Wilson, 2009). Ta organizacja opiera się na podziale pracy, komunikacji i skoordynowanych reakcjach, dzięki którym rodzina wykonuje zadania przekraczające możliwości pojedynczych pszczół. Jednym z najbardziej niezwykłych skutków tej organizacji jest zdolność utrzymania wewnętrznej równowagi (homeostazy) mimo zmian w otoczeniu.
Regulacja temperatury jest szczególnie wyraźnym przykładem działania superorganizmu. W przeciwieństwie do pojedynczych pszczół, których temperatura ciała mocno się waha, rodzina potrafi wspólnie regulować warunki termiczne w gnieździe, zwłaszcza w strefie czerwiu. Robi to dzięki skoordynowanym zachowaniom: wytwarzaniu ciepła, tworzeniu kłębu, wentylacji i chłodzeniu przez parowanie, które pozwalają jej elastycznie reagować na zmiany (Stabentheiner i in., 2010, 2021). Odpowiednie warunki termiczne są niezbędne dla rozwoju czerwiu, procesów metabolicznych i funkcjonowania całej rodziny.
Jak pszczoły ogrzewają i chłodzą ul
Rodziny pszczele utrzymują równowagę termiczną dzięki dwóm uzupełniającym się procesom: aktywnemu wytwarzaniu ciepła i chłodzeniu. W chłodzie robotnice tworzą zwarty kłąb, który ogranicza utratę ciepła, a najwięcej pszczół skupia się w jego wnętrzu, gdzie ich aktywność pomaga utrzymać temperaturę (Stabentheiner i in., 2003). W gnieździe czerwiu pszczoły karmicielki przekazują ciepło bezpośrednio rozwijającemu się czerwiowi (Bujok i in., 2002; Kleinhenz i in., 2003). Dzięki tym mechanizmom rodzina reguluje temperaturę czerwiu nawet przy niesprzyjającej pogodzie.
Chłodzenie opiera się przede wszystkim na skoordynowanym wachlowaniu skrzydłami i parowaniu wody. Gdy temperatura w gnieździe rośnie, robotnice zwiększają przepływ powietrza przez ul, często wachlując skrzydłami przy wylotku, i rozprowadzają przyniesioną wodę po powierzchniach gniazda, tak by ciepło uchodziło przez parowanie (Stabentheiner i in., 2021). Wachlowanie wentyluje też ul i odparowuje nadmiar wody z nektaru podczas dojrzewania miodu. Stabilność termiczna zależy więc nie tylko od liczby robotnic, ale też od ich skoordynowanych reakcji na zmieniające się warunki i od różnorodności genetycznej rodziny (Jones i in., 2004).
Temperatura czerwiu: co daje stała temperatura i ile kosztuje kilka stopni
Utrzymanie 35 °C jest kosztowne, więc musi być coś warte. Poczwarki rozwijające się w 32, 34,5 i 36 °C dają dorosłe pszczoły o innym zachowaniu: te z cieplejszego końca więcej tańczą i lepiej zapamiętują (Tautz i in., 2003). Efekt sięga mózgu, gdzie organizacja synaps w ciałach grzybkowatych dorosłej pszczoły zależy od temperatury, w jakiej rozwijała się poczwarka (Groh i in., 2004). Pszczoły wychowane poza optimum mają mniejszą stabilność rozwojową oraz słabszą zdolność uczenia się i pamięć (Jones i in., 2005).
Koszt rośnie, gdy w grę wchodzi patogen. Schłodzenie larw piątego stadium do 18 °C na 24 godziny przed zasklepieniem komórek, a potem trzymanie ich w 25 °C, wywołuje u Apis mellifera grzybicę wapienną z odsetkiem zmumifikowanych larw bliskim 95 procent (Flores i in., 1996). Ascosphaera apis rośnie w hodowli w zakresie mniej więcej 22 do 37 °C, z optimum blisko 30 °C (Mráz i in., 2021). Grzyb najlepiej rozwija się więc dokładnie tam, gdzie trafia rodzina, która straciła kontrolę nad temperaturą. Uszkodzenia tkanek, jakie wywołuje w larwie, opisano od tego czasu szczegółowo (von Knoblauch i in., 2024). Schłodzenie nie jest tylko powiązane z grzybicą wapienną. W badaniach eksperymentalnych jest jej wyzwalaczem.
Gdy temperatura w ulu spada: skutki fizjologiczne i ryzyko dla zdrowia rodziny
Spadek temperatury w ulu to często jeden z pierwszych sygnałów, które niepokoją pszczelarzy monitorujących rodziny. Jego znaczenie biologiczne zależy jednak od pory roku, położenia czujnika i stanu fizjologicznego rodziny. Spadek może oznaczać mniej czerwiu, sezonowe zmiany w organizacji rodziny albo kłąb zimowy, który odsunął się od punktu pomiaru. Gdy jednak temperatura spada w gnieździe czerwiu i utrzymuje się poniżej zakresu potrzebnego do prawidłowego rozwoju, skutki mogą wykraczać daleko poza chwilowe zaburzenie równowagi termicznej.
Z punktu widzenia monitorowania rodzin nie każdy spadek temperatury trzeba traktować jako objaw choroby. Zimą czerwienie może być ograniczone albo chwilowo wstrzymane, a rodzina nie musi utrzymywać temperatury czerwiu w całym gnieździe. Wtedy niższe odczyty mogą odzwierciedlać normalną fizjologię sezonową, a nie zaburzoną termoregulację. Z kolei trwałe zmiany w rozkładzie przestrzennym lub zmienności temperatury w gnieździe mogą świadczyć o pogarszającym się stanie rodziny. Minaud i in. (2024b), używając wielu czujników temperatury w zimujących rodzinach, wykazali, że niejednorodność termiczna pomagała odróżnić rodziny, które przetrwały, od tych, które się załamywały.
Spadek temperatury trzeba więc oceniać, biorąc pod uwagę czas trwania, wielkość, miejsce i porę roku. Pojedynczy niski odczyt nie dowodzi, że rodzina jest chora albo osłabiona. Trwałe wychłodzenie aktywnej strefy czerwiu, zwłaszcza w połączeniu z innymi oznakami pogorszenia stanu rodziny, może jednak być wczesnym ostrzeżeniem przed zaburzeniami rozwoju lub zwiększonym ryzykiem choroby.
Gdy temperatura w ulu rośnie: rozwój rodziny, rójka i stres cieplny
Wzrost temperatury w ulu może oznaczać różne procesy biologiczne, od normalnego rozwoju rodziny przez rozmnażanie po nadmierny stres cieplny. W przeciwieństwie do trwałego spadku temperatury w gnieździe czerwiu, który może budzić obawy o zdolność rodziny do zapewnienia warunków rozwoju, wzrostu nie da się uznać za korzystny albo szkodliwy bez uwzględnienia jego momentu, wielkości i czasu trwania. Podobne reakcje termiczne mogą towarzyszyć zupełnie różnym zdarzeniom.
Jedną z najważniejszych sezonowych zmian związanych ze wzrostem temperatury w gnieździe jest wznowienie i nasilenie czerwienia. W klimacie umiarkowanym rodziny ograniczają czerw zimą i stopniowo go wznawiają, gdy warunki się poprawiają. Rozwijający się czerw wymaga stabilniejszych warunków, więc przejście od stanu bez czerwiu do czerwienia widać w profilu temperatury gniazda. Nürnberger i in. (2018) wykazali, że rosnąca temperatura otoczenia może pobudzać czerwienie w zimujących rodzinach, a Stalidzans i Berzonis (2013), że długoterminowe pomiary temperatury pozwalają rozróżnić kolejne sezonowe etapy rozwoju rodziny. Stopniowy wzrost, po którym temperatura się stabilizuje, może więc oznaczać rozpoczęcie lub rozszerzenie czerwienia, a nie nieprawidłowe zdarzenie.
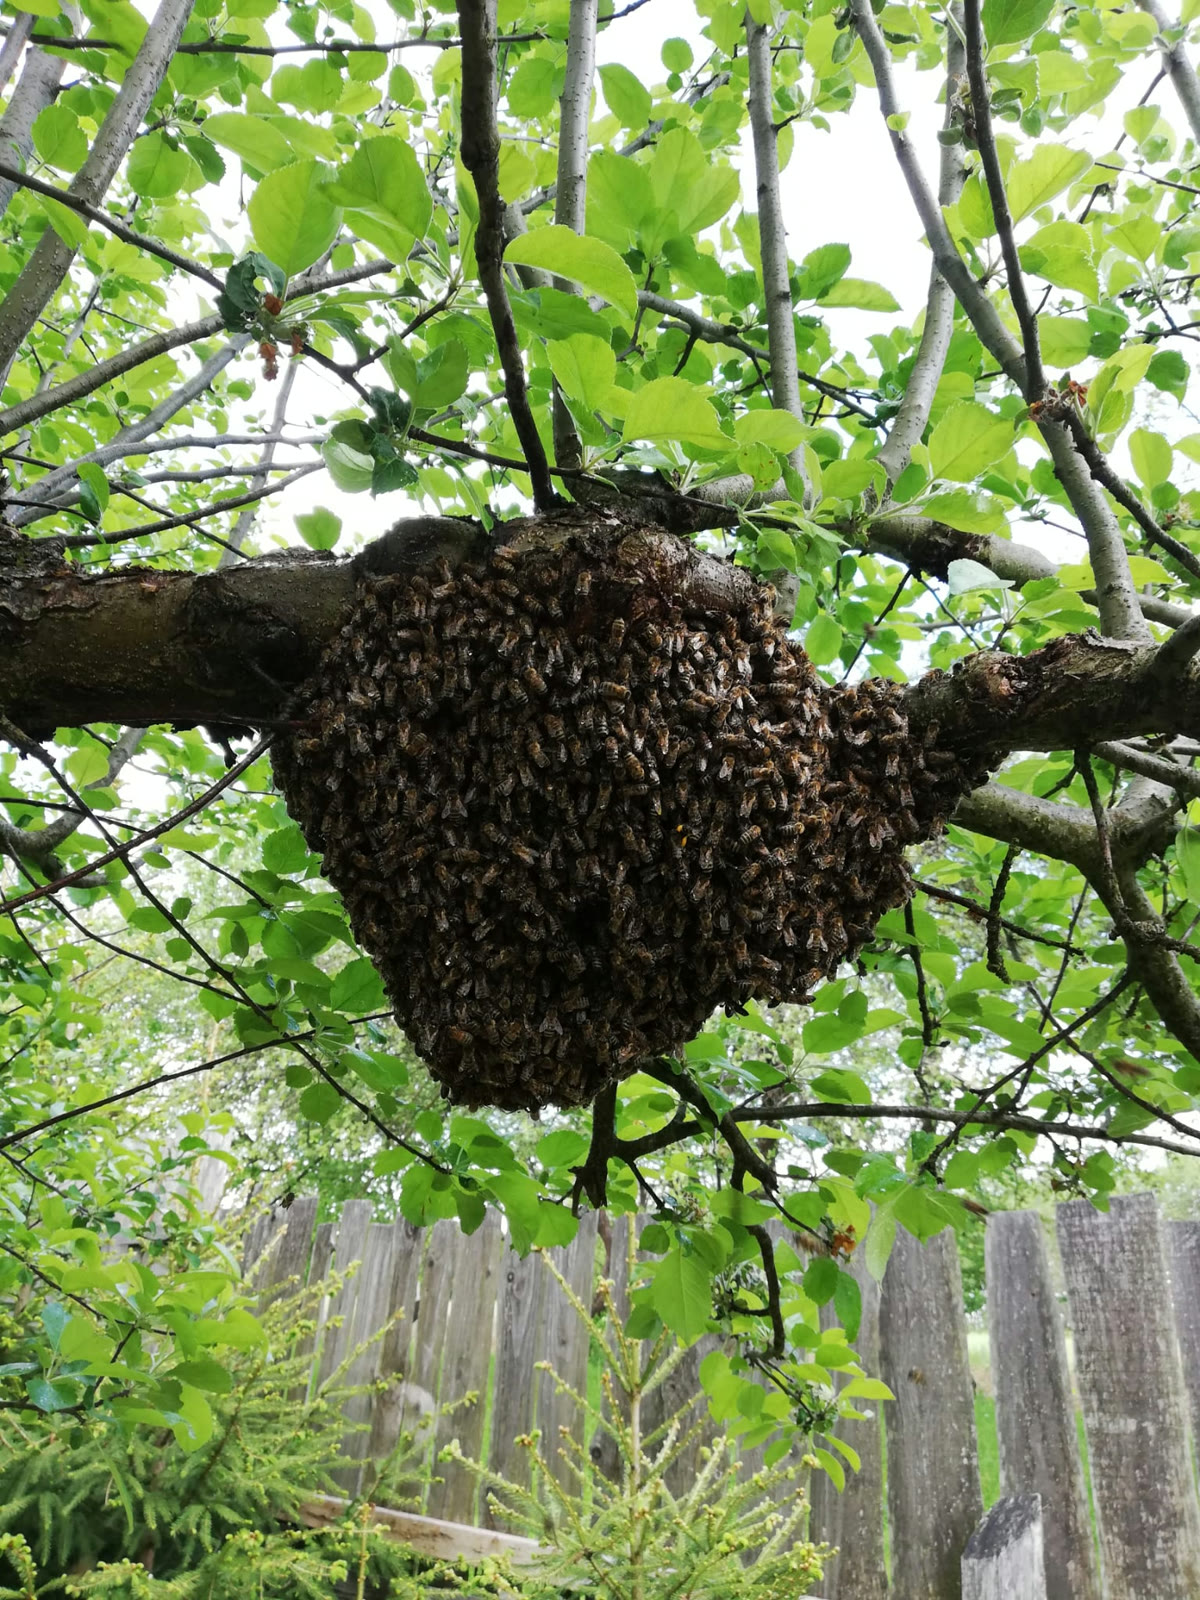
Szybszy i krótkotrwały wzrost temperatury może wiązać się z rójką, naturalnym procesem, w którym rodzina się dzieli. Przed wylotem roju wzmożona aktywność robotnic i wspólne przygotowania do lotu mogą dawać charakterystyczny wzrost temperatury. Zacepins i in. (2016) monitorowali dziesięć rodzin i obserwowali wzrosty temperatury o około 1,5 do 3,4 °C w ostatnich 8 do 20 minutach przed wylotem roju. Temperatura mierzona nad gniazdem czerwiu rosła z około 34 do 35 °C do 37 do 38 °C, a po wylocie roju spadała. Ferrari i in. (2008) również opisali wzrost temperatury w ulu połączony ze zmianami dźwięku w okresie rójki, co przemawia za łączeniem pomiarów temperatury i akustyki.
Podobne wyniki uzyskano u pszczoły wschodniej (Apis cerana). Zhu i in. (2019) zaobserwowali stopniowy wzrost temperatury przed rójką: początkowo około 0,069 °C na minutę, potem szybciej, około 0,314 °C na minutę. Najwyraźniejszą reakcję termiczną zarejestrowano w jednym konkretnym miejscu przy wylotku, między ścianą ula a pierwszą ramką. Wykrycie zmian temperatury związanych z rójką zależy więc mocno od położenia czujnika. Czujnik w gnieździe czerwiu może pokazać inny przebieg niż czujnik przy wylotku albo nad górnymi ramkami.
Podwyższona temperatura może też oznaczać nadmierne ciepło z otoczenia, zwłaszcza gdy chłodzenie nie wystarcza, by utrzymać odpowiednie warunki w gnieździe. Długotrwały stres cieplny może wtedy zakłócać normalne procesy fizjologiczne i uruchamiać komórkowe mechanizmy ochronne. Białka szoku cieplnego (HSP), w tym z rodziny Hsp70, odgrywają ważną rolę w ochronie białek komórkowych przed uszkodzeniem przez wysoką temperaturę. Alqarni i in. (2019) stwierdzili zmiany w ekspresji białek szoku cieplnego u dorosłych robotnic wystawionych w eksperymencie na 40 i 45 °C przez cztery godziny. Reakcje różniły się między karmicielkami a zbieraczkami oraz między podgatunkami pszczół, co sugeruje, że tolerancja na ciepło i odpowiedź komórkowa na stres zależą zarówno od roli w rodzinie, jak i od genetyki.
Znaczenie podwyższonej temperatury zależy więc nie tylko od jej wartości, ale też od czasu ekspozycji, etapu rozwoju i zdolności rodziny do oddawania nadmiaru ciepła. Dorosłe robotnice mogą fizjologicznie lepiej znosić wysokie temperatury, ale rozwijający się czerw wymaga ściślej kontrolowanych warunków. Długotrwałe przegrzanie może zaburzyć warunki rozwoju, nawet gdy robotnice pozostają aktywne, a rodzina początkowo wydaje się funkcjonować normalnie.
Dla pszczelarstwa precyzyjnego te wyniki pokazują podstawowe ograniczenie: wzrostu temperatury nie da się czytać jako jednego sygnału diagnostycznego. Stopniowy i trwały wzrost może oznaczać wznowienie czerwienia, szybki i krótkotrwały może towarzyszyć rójce, a długo utrzymująca się wysoka temperatura w upały może świadczyć o stresie cieplnym. Rozróżnienie tych procesów wymaga uwzględnienia rytmu sezonowego, temperatury otoczenia, położenia czujnika i dodatkowych pomiarów, takich jak wilgotność, dźwięk czy masa ula. Monitorowanie temperatury daje najwięcej, gdy zmiany termiczne czyta się jako część szerszej reakcji fizjologicznej i behawioralnej, a nie jako osobne wskaźniki stanu rodziny.
Gdzie umieścić czujnik temperatury w ulu
Badanie Zhu i in. zawiera szczegół ważny dla każdego, kto instaluje czujniki. Najwyraźniejszy sygnał pojawił się w jednym konkretnym miejscu: w odstępie pszczelim między ścianą ula a pierwszą ramką od strony wylotka (Zhu i in., 2019). Najlepsze miejsce do wychwycenia rójki nie jest najlepszym miejscem do obserwowania czerwiu.
Wszystko powyżej opisuje wielkość, którą rodzina reguluje. Termometr w ulu tej wielkości nie mierzy. Mierzy temperaturę w jednym punkcie przestrzennego pola temperatur, a to, jak dobrze jedno odpowiada drugiemu, zależy wyłącznie od położenia tego punktu.
Wiedziano o tym, zanim elektronika ułatwiła o tym zapominanie. Klasyczne badania termiki zimujących rodzin opierały się na około 1,2 miliona odczytów termopar z jednego pełnowymiarowego ula Langstrotha, bo jedna sonda nigdy nie opisałaby całości (Owens, 1971). Współczesne prace doszły do tego samego wniosku z lepszym sprzętem (Besson i in., 2021; Minaud i in., 2024b).
Jeden dobrze umieszczony czujnik daje za to szereg czasowy, a większość informacji niesie jego kształt (Meikle i Holst, 2015). Ule pracujące przy komercyjnym zapylaniu wchodzą w zimę z mniejszą liczbą pszczół, mniejszą ilością czerwiu, niższą średnią temperaturą i większą zmiennością w ciągu doby niż ule na naturalnych pożytkach (Meikle i in., 2017).
Jak ciepły jest kłąb zimowy?
Latem gniazdo czerwiu wiąże pole temperatur z konkretnym miejscem. Zimą ten punkt odniesienia znika, a struktura, którą rodzina tworzy w zamian, jest najtrudniejszym przypadkiem dla każdego systemu monitorowania.
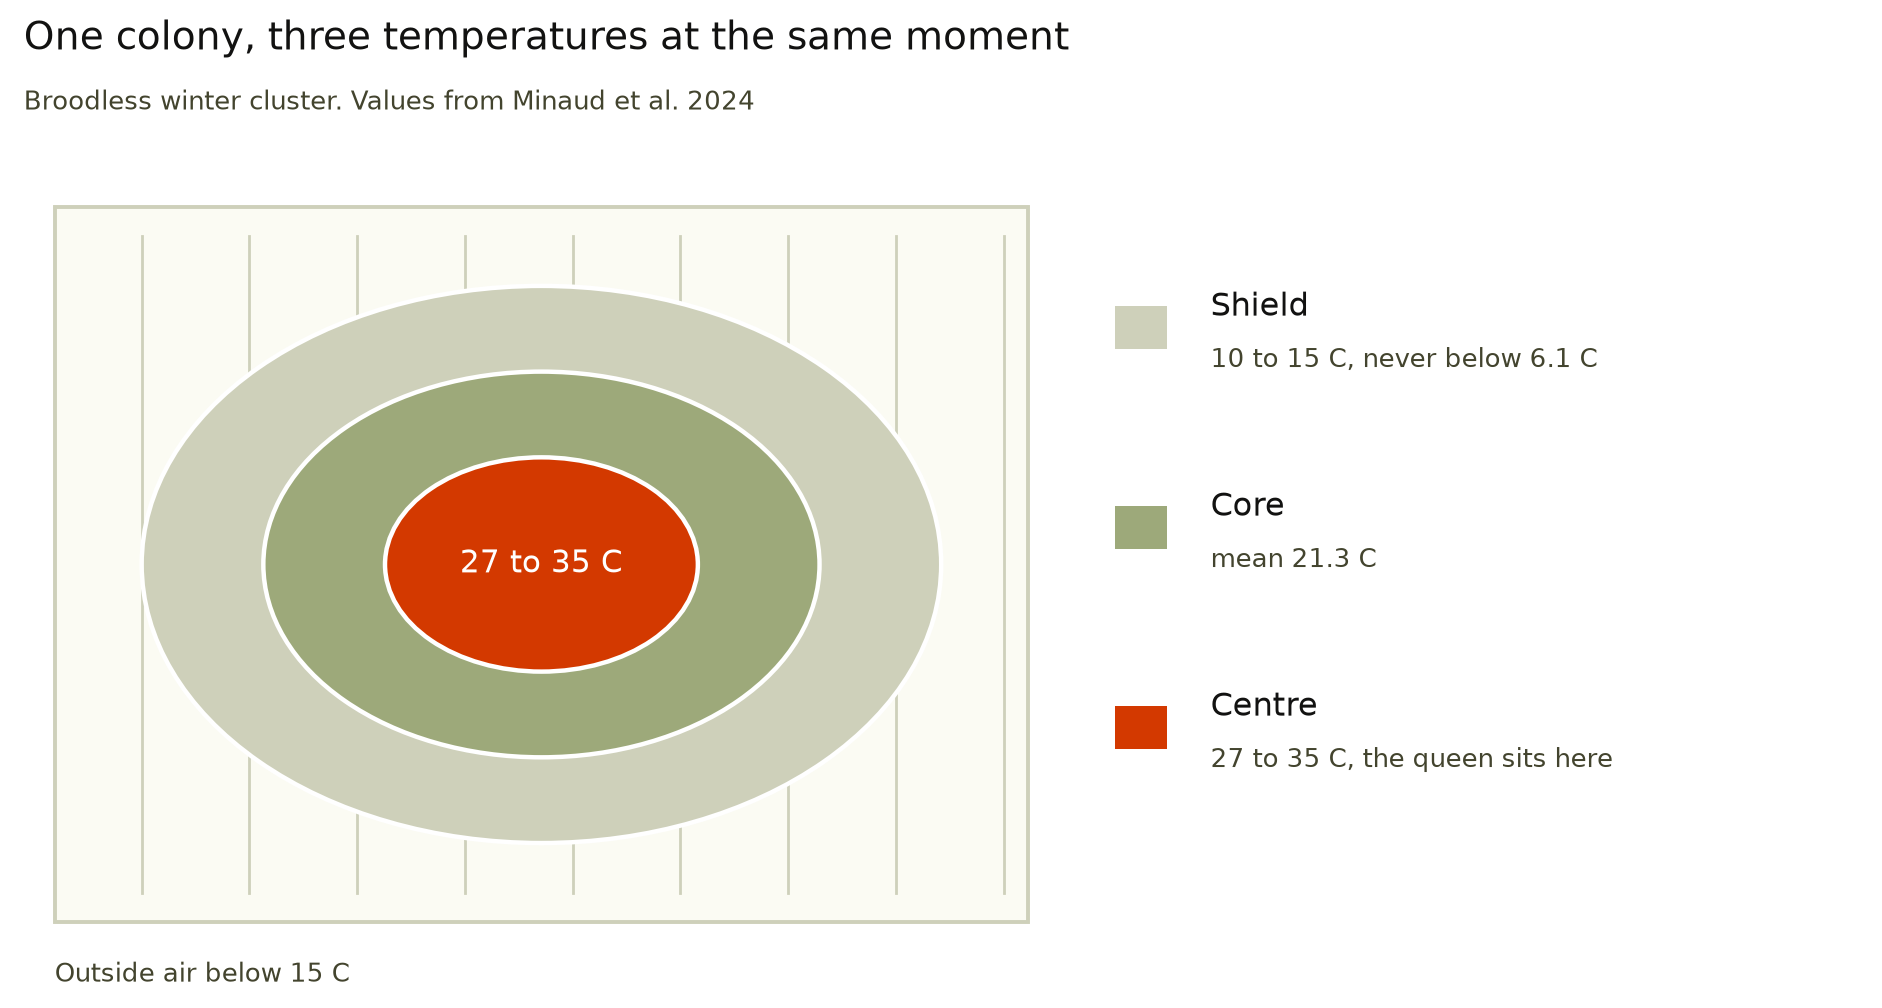
Kłąb tworzy się, gdy temperatura na zewnątrz spada poniżej około 15 °C. Jego zewnętrzna warstwa ciasno upakowanych pszczół ma 10 do 15 °C i nigdy nie spada poniżej 6,1 °C, wnętrze ma średnio 21,3 °C przy zakresie 18 do 29 °C, a centrum, w którym przebywa matka, utrzymywane jest w 27 do 35 °C (Minaud i in., 2024a). Te liczby opisują jedną rodzinę jednej nocy. Sonda dotykająca zewnętrznej warstwy i sonda w centrum mierzą rodzinę poprawnie, a mimo to różnią się o dwadzieścia stopni.
Kłąb nie jest też obiektem stałym. Kurczy się w zimne dni, rozluźnia, gdy warunki pozwalają na przepływ powietrza, a przy temperaturze zewnętrznej poniżej 5 °C przestaje się dalej kurczyć i zaczyna wytwarzać dodatkowe ciepło (Minaud i in., 2024a). Odległość między nieruchomym czujnikiem a najbliższą pszczołą zmienia się więc z pogodą, kilka razy w tygodniu.
Do tego kłąb się przemieszcza. W ciągu zimy przesuwa się, rozszerza i zmienia kształt, żeby mieć dostęp do niezjedzonych jeszcze zapasów miodu (Minaud i in., 2024a). Dlatego rodzina może zginąć z głodu kilka centymetrów od pełnych plastrów, gdy długi mróz nie pozwala jej się przesunąć. Dla nieruchomego czujnika takie przemieszczenie wygląda dokładnie tak samo jak rodzina, która wychładza się i umiera.
Wyjście z tego problemu jest statystyczne, a nie bezwzględne. Amplituda temperatur w gnieździe odróżnia rodziny, które przetrwają, od tych, które giną, stabilność temperatury maksymalnej wskazuje, czy jest czerw, a rozrzut temperatur między czujnikami pozwala oszacować, ile go jest (Minaud i in., 2024b). To cechy rozkładu, a nie pojedynczego odczytu.
Od temperatury do łączenia danych
Spadek temperatury z rosnącą zmiennością w ciągu doby może poprzedzać chorobę czerwiu. Może też oznaczać słabnącą lub brakującą matkę, kurczącą się strefę czerwiu, nagły przymrozek albo kłąb, który po prostu odsunął się od sondy. Wzrost może oznaczać czerwienie, rójkę, upał, transport albo źle wentylowany ul. Reakcje termiczne są podobne, a przyczyny różne.
Dwa kolejne zjawiska dodatkowo zawężają margines. Temperatura w ulu i stężenie CO₂ mają rytm dobowy, który utrzymuje się bez zewnętrznych bodźców (Meikle i Weiss, 2025), więc przebieg dobowy ma swój poziom bazowy, który w ogóle nie zależy od zdrowia rodziny. A receptory termiczne pszczół rozróżniają zmiany już o 0,2 °C, co przyjmuje się jako cel projektowy dla czujników w ulach (Gupta i in., 2026).
Temperatura mówi, że stan termiczny rodziny się zmienił i mniej więcej kiedy. Dlaczego, może powiedzieć dopiero niezależny kanał chemiczny. Naturalnym kandydatem są lotne związki organiczne, bo choroby czerwiu zmieniają zapach gniazda, zanim zmienią jego wygląd, a lotne związki z powietrza w ulu pozwalają nieinwazyjnie rozpoznać czynnik chorobotwórczy (Asiri i in., 2025). O tym, jak rodziny bronią się przed chorobami, pisaliśmy w artykule Samoochronny ul.
Na tej zasadzie zbudowana jest platforma Apisense. Ciągły pomiar temperatury w ulu razem z gazami i lotnymi związkami, który umożliwia Apisense VitalSensor, daje dwa uzupełniające się spojrzenia na tę samą rodzinę, które zawodzą w różnych sytuacjach, a kanałowi chemicznemu jest obojętne, gdzie przesunął się kłąb. Bee Health Intelligence w praktyce oznacza łączenie tych kanałów, a nie dokładanie czujników z nadzieją, że coś wyjdzie. Opisane tu wyniki dotyczące temperatury przedstawiliśmy na dorocznym spotkaniu niemieckojęzycznego stowarzyszenia badaczy pszczół w Brunszwiku w marcu 2026 roku (Bryś i in., 2026). Prezentacja wywołała ożywioną dyskusję z naukowcami i pszczelarzami, a nowe kontakty i współprace, które z niej wynikły, wpływają dziś na to, jak projektujemy i interpretujemy nasze pomiary terenowe.
Bibliografia
- Alqarni, A. S., Ali, H., Iqbal, J., Owayss, A. A., & Smith, B. H. (2019). Expression of heat shock proteins in adult honey bee (Apis mellifera L.) workers under hot-arid subtropical ecosystems. Saudi Journal of Biological Sciences, 26(7), 1372 to 1376. https://pmc.ncbi.nlm.nih.gov/articles/PMC6864156
- Asiri, A., Perkins, S. E., & Müller, C. T. (2025). The smell of infection, disease surveillance in insects using volatile organic compounds. Agricultural and Forest Entomology, 27(1), 81 to 89. https://doi.org/10.1111/afe.12651
- Besson, O., et al. (2021). Bee Cluster 3D, a system to monitor the temperature in a hive over time. arXiv:2101.03125. https://arxiv.org/abs/2101.03125
- Bryś, M. S., Kądziołka, B., Stasiowska, D., Wierzbiński, M., Cibor, S. (2026) From temperature to data fusion, effective monitoring of honeybee colony health. Presented at the meeting of the German speaking bee research association, Braunschweig, March 2026.
- Bujok, B., Kleinhenz, M., Fuchs, S., & Tautz, J. (2002). Hot spots in the bee hive. Naturwissenschaften, 89, 299 to 301. https://doi.org/10.1007/s00114-002-0338-7
- Ferrari, S., Silva, M., Guarino, M., & Berckmans, D. (2008). Monitoring of swarming sounds in bee hives for early detection of the swarming period. Computers and Electronics in Agriculture, 64(1), 72 to 77. https://doi.org/10.1016/j.compag.2008.05.010
- Flores, J. M., Ruiz, J. A., Ruz, J. M., Puerta, F., Bustos, M., Padilla, F., & Campano, F. (1996). Effect of temperature and humidity of sealed brood on chalkbrood development under controlled conditions. Apidologie, 27, 185 to 192. https://www.apidologie.org/articles/apido/abs/1996/04/Apidologie_0044-8435_1996_27_4_ART0001/
- Groh, C., Tautz, J., & Rössler, W. (2004). Synaptic organization in the adult honey bee brain is influenced by brood temperature control during pupal development. PNAS, 101(12), 4268 to 4273. https://doi.org/10.1073/pnas.0400773101
- Gupta, S. D., Erickson, J., Rinehart, J., Braaten, B. D., & Eshkabilov, S. (2026). A wireless sensor platform for beehive monitoring. Sensors, 26(6), 1846. https://doi.org/10.3390/s26061846
- Heinrich, B. (1979). Thermoregulation of African and European honeybees during foraging, attack, and hive exits and returns. Journal of Experimental Biology, 80(1), 217 to 229.
- Hölldobler, B., & Wilson, E. O. (2009). The Superorganism, the Beauty, Elegance, and Strangeness of Insect Societies. W. W. Norton & Company, New York.
- Jones, J. C., Myerscough, M. R., Graham, S., & Oldroyd, B. P. (2004). Honey bee nest thermoregulation, diversity promotes stability. Science, 305(5682), 402 to 404. https://doi.org/10.1126/science.1096340
- Jones, J. C., Helliwell, P., Beekman, M., Maleszka, R., & Oldroyd, B. P. (2005). The effects of rearing temperature on developmental stability and learning and memory in the honey bee, Apis mellifera. Journal of Comparative Physiology A, 191, 1121 to 1129. https://doi.org/10.1007/s00359-005-0035-z
- Kleinhenz, M., Bujok, B., Fuchs, S., & Tautz, J. (2003). Hot bees in empty broodnest cells, heating from within. Journal of Experimental Biology, 206(23), 4217 to 4231. https://doi.org/10.1242/jeb.00680
- Meikle, W. G., & Holst, N. (2015). Application of continuous monitoring of honeybee colonies. Apidologie, 46(1), 10 to 22. https://doi.org/10.1007/s13592-014-0298-x
- Meikle, W. G., Weiss, M., Maes, P. W., et al. (2017). Internal hive temperature as a means of monitoring honey bee colony health in a migratory beekeeping operation before and during winter. Apidologie. https://doi.org/10.1007/s13592-017-0512-8
- Meikle, W. G., & Weiss, M. (2025). Temperature and CO2 concentration in honey bee hives exhibit circadian rhythms. Scientific Reports, 15. https://doi.org/10.1038/s41598-025-03614-3
- Minaud, É., Rebaudo, F., Davidson, P., Hatjina, F., Hotho, A., Mainardi, G., Steffan-Dewenter, I., Vardakas, P., Verrier, P., & Requier, F. (2024a). How stressors disrupt honey bee biological traits and overwintering mechanisms. Heliyon, 10(14), e34390. https://doi.org/10.1016/j.heliyon.2024.e34390
- Minaud, É., Rebaudo, F., Mainardi, G., Vardakas, P., Hatjina, F., Steffan-Dewenter, I., & Requier, F. (2024b). Temperature in overwintering honey bee colonies reveals brood status and predicts colony mortality. Ecological Indicators, 112961. https://doi.org/10.1016/j.ecolind.2024.112961
- Mráz, P., Hýbl, M., Kopecký, M., Bohatá, A., Konopická, J., Hoštičková, I., Konvalina, P., Šipoš, J., Rost, M., & Čurn, V. (2021). The effect of artificial media and temperature on the growth and development of the honey bee brood pathogen Ascosphaera apis. Biology, 10(5), 431. https://doi.org/10.3390/biology10050431
- Nürnberger, F., Härtel, S., & Steffan-Dewenter, I. (2018). The influence of temperature and photoperiod on the timing of brood onset in hibernating honey bee colonies. PeerJ, 6, e4801. https://doi.org/10.7717/peerj.4801
- Owens, C. D. (1971). The thermology of wintering honey bee colonies. USDA Technical Bulletin 1429. https://ageconsearch.umn.edu/record/171857
- Seeley, T. D. (1989). The honey bee colony as a superorganism. American Scientist, 77(6), 546 to 553. https://www.semanticscholar.org/paper/c718628d4e61fe781ac0ddf5e5ae26d8245f1495
- Stabentheiner, A., Pressl, H., Papst, T., Hrassnigg, N., & Crailsheim, K. (2003). Endothermic heat production in honeybee winter clusters. Journal of Experimental Biology, 206(2), 353 to 358. https://journals.biologists.com/jeb/article/206/2/353/13914/
- Stabentheiner, A., Kovac, H., & Brodschneider, R. (2010). Honeybee colony thermoregulation, regulatory mechanisms and contribution of individuals in dependence on age, location and thermal stress. PLoS ONE, 5(1), e8967. https://doi.org/10.1371/journal.pone.0008967
- Stabentheiner, A., Kovac, H., Mandl, M., & Käfer, H. (2021). Coping with the cold and fighting the heat, thermal homeostasis of a superorganism, the honeybee colony. Journal of Comparative Physiology A, 207(3), 337 to 351. https://doi.org/10.1007/s00359-021-01464-8
- Stalidzans, E., & Berzonis, A. (2013). Temperature changes above the upper hive body reveal the annual development periods of honey bee colonies. Computers and Electronics in Agriculture, 90, 1 to 6. https://doi.org/10.1016/j.compag.2012.10.003
- Tautz, J., Maier, S., Groh, C., Rössler, W., & Brockmann, A. (2003). Behavioral performance in adult honey bees is influenced by the temperature experienced during their pupal development. PNAS, 100(12), 7343 to 7347. https://doi.org/10.1073/pnas.1232346100
- von Knoblauch, T., Jensen, A. B., Mülling, C. K. W., Aupperle-Lellbach, H., & Genersch, E. (2024). Chalkbrood disease caused by Ascosphaera apis in honey bees, morphological and histological changes in infected larvae. Veterinary Sciences, 11, 415. https://doi.org/10.3390/vetsci11090415
- Zacepins, A., Kviesis, A., Stalidzans, E., Liepniece, M., & Meitalovs, J. (2016). Remote detection of the swarming of honey bee colonies by single point temperature monitoring. Biosystems Engineering, 148, 76 to 80. https://doi.org/10.1016/j.biosystemseng.2016.05.012
- Zhu, X., Wen, X., Zhou, S., Xu, X., Zhou, L., & Zhou, B. (2019). The temperature increase at one position in the colony can predict honey bee swarming (Apis cerana). Journal of Apicultural Research, 58(4). https://doi.org/10.1080/00218839.2019.1632149