
Qué dice la temperatura de la colmena sobre una colonia de abejas
Dos sensores en la misma colmena pueden diferir en veinte grados, y los dos tienen razón. Cómo calientan y enfrían las abejas su nido, qué suponen unos grados para la cría, cómo se ven la enjambrazón y el racimo invernal en los datos de temperatura y por qué un solo termómetro no basta para valorar la salud de la colonia.
Dos sensores en la misma colmena, en el mismo momento, pueden diferir en veinte grados, y los dos tienen razón. La temperatura dentro de una colonia de abejas melíferas está lejos de ser uniforme, y las mediciones tomadas a la vez en distintos puntos pueden mostrar grandes diferencias.
La unidad funcional básica de la termorregulación es la colonia de abeja melífera (Apis mellifera), no la obrera individual. Las abejas son insectos pequeños cuya temperatura corporal depende mucho del ambiente, pero pueden generar calor metabólico activando los músculos de vuelo del tórax, incluso sin volar (Heinrich, 1979; Stabentheiner et al., 2010). A nivel de colonia, las respuestas fisiológicas y de comportamiento coordinadas de muchas obreras mantienen el nido de cría a temperaturas relativamente estables, normalmente en torno a 34 a 36 °C, pese a las variaciones exteriores (Kleinhenz et al., 2003; Stabentheiner et al., 2021).
Un sensor de temperatura no mide si una colonia está “sana” o “enferma”. Mide las condiciones térmicas en un punto concreto de un sistema vivo y complejo. Para entender qué significa una lectura, primero hay que saber por qué las abejas regulan la temperatura, cómo cambia esa regulación a lo largo de la temporada y, quizá lo más importante, cómo patrones de temperatura parecidos pueden surgir de procesos biológicos completamente distintos. Recoger datos es cada vez más sencillo. Convertir las mediciones en bruto en una interpretación biológica útil de la actividad de la colonia sigue siendo mucho más difícil. Es uno de los grandes retos de la apicultura de precisión.
La colonia de abejas como superorganismo
La colonia de abejas melíferas se describe a menudo como un superorganismo: un sistema biológico muy organizado en el que miles de individuos funcionan como una unidad integrada y no como organismos independientes (Seeley, 1989; Hölldobler y Wilson, 2009). Esta organización se basa en la división del trabajo, la comunicación y respuestas coordinadas, que permiten a la colonia realizar funciones que superan las capacidades de cada abeja. Una de sus consecuencias más notables es la capacidad de mantener el equilibrio interno (homeostasis) pese a los cambios del entorno.
La regulación de la temperatura es un ejemplo especialmente claro de cómo funciona el superorganismo. A diferencia de las abejas individuales, cuya temperatura corporal varía mucho, la colonia puede regular de forma colectiva las condiciones térmicas del nido, sobre todo en la zona de cría. Lo consigue mediante comportamientos coordinados como la producción de calor, la formación del racimo, la ventilación y el enfriamiento por evaporación, que le permiten responder con flexibilidad a los cambios (Stabentheiner et al., 2010, 2021). Unas condiciones térmicas adecuadas son esenciales para el desarrollo de la cría, el metabolismo y el funcionamiento de toda la colonia.
Cómo calientan y enfrían las abejas la colmena
Las colonias mantienen su equilibrio térmico mediante dos procesos complementarios: la producción activa de calor y el enfriamiento. Con frío, las obreras forman un racimo compacto que reduce la pérdida de calor, con más abejas en el núcleo, donde su actividad ayuda a mantener la temperatura interior (Stabentheiner et al., 2003). En el nido de cría, las nodrizas transfieren calor directamente a la cría en desarrollo (Bujok et al., 2002; Kleinhenz et al., 2003). Gracias a estos mecanismos, la colonia regula la temperatura de la cría incluso con tiempo desfavorable.
El enfriamiento depende sobre todo del aleteo coordinado y de la evaporación. Cuando sube la temperatura del nido, las obreras aumentan el flujo de aire en la colmena, a menudo aleteando en la piquera, y reparten el agua recogida sobre las superficies del nido para que el calor se disipe por evaporación (Stabentheiner et al., 2021). El aleteo también ventila la colmena y evapora el exceso de agua del néctar durante la maduración de la miel. La estabilidad térmica depende, por tanto, no solo del número de obreras sino también de sus respuestas coordinadas y de la diversidad genética de la colonia (Jones et al., 2004).
Temperatura de la cría: lo que aporta el punto óptimo y lo que cuestan unos grados
Mantener 35 °C es caro, así que debe valer la pena. Las pupas criadas a 32, 34,5 y 36 °C dan lugar a abejas adultas con comportamientos distintos: las del extremo más cálido bailan más y recuerdan mejor (Tautz et al., 2003). El efecto llega al cerebro, donde la organización sináptica de los cuerpos pedunculados de la abeja adulta depende de la temperatura durante el desarrollo pupal (Groh et al., 2004). Las abejas criadas lejos del óptimo muestran menor estabilidad del desarrollo y peor aprendizaje y memoria (Jones et al., 2005).
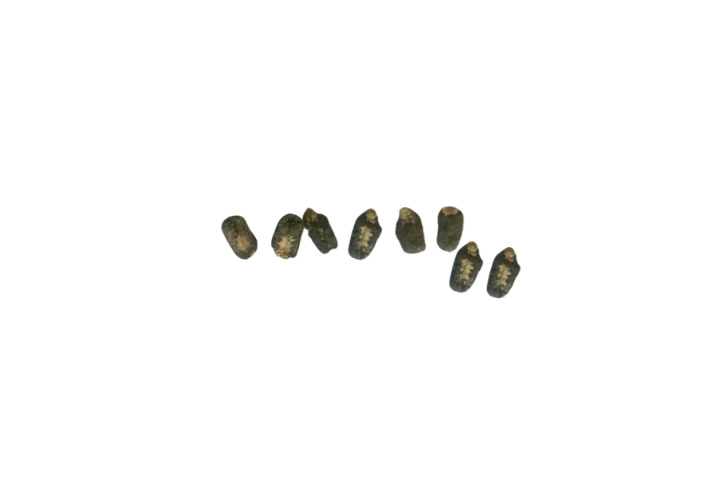
El coste es mayor cuando interviene un patógeno. Enfriar larvas de quinto estadio a 18 °C durante 24 horas antes de que se operculen las celdas, y mantenerlas después a 25 °C, provoca cría yesificada en Apis mellifera con tasas de momificación cercanas al 95 por ciento (Flores et al., 1996). Ascosphaera apis crece en cultivo entre unos 22 y 37 °C, con un óptimo cerca de 30 °C (Mráz et al., 2021). Es decir, el hongo prospera justo donde acaba una colonia que ha perdido el control térmico. Los daños histológicos que causa en la larva se han descrito después con detalle (von Knoblauch et al., 2024). El enfriamiento no solo está asociado a la cría yesificada. En la literatura experimental es el desencadenante.
Cuando baja la temperatura de la colmena: consecuencias fisiológicas y riesgos para la salud de la colonia
Un descenso de la temperatura en la colmena suele ser una de las primeras señales que preocupan a los apicultores que vigilan sus colonias. Su significado biológico, sin embargo, depende de la estación, de la posición del sensor y del estado fisiológico de la colonia. Puede reflejar menos cría, cambios estacionales en la organización de la colonia o un racimo invernal que se ha alejado del punto de medición. Pero cuando la temperatura baja en el nido de cría y se mantiene por debajo del rango necesario para un desarrollo normal, las consecuencias pueden ir mucho más allá de una alteración pasajera del equilibrio térmico.
Desde el punto de vista de la monitorización, no todo descenso de temperatura debe interpretarse como un problema patológico. En invierno la cría puede reducirse o detenerse temporalmente, y la colonia no tiene por qué mantener temperaturas de cría en todo el nido. En esos casos, lecturas más bajas pueden reflejar una fisiología estacional normal y no una termorregulación alterada. En cambio, cambios persistentes en la distribución espacial o en la variabilidad de la temperatura del nido pueden indicar un deterioro de la colonia. Minaud et al. (2024b), con varios sensores de temperatura en colonias en invernada, demostraron que la heterogeneidad térmica ayudaba a distinguir las colonias que sobrevivían de las que colapsaban.
Por eso un descenso de temperatura debe evaluarse según su duración, magnitud, ubicación y contexto estacional. Una sola lectura baja no demuestra que la colonia esté enferma o debilitada. Sin embargo, un enfriamiento sostenido en una zona de cría activa, sobre todo si va acompañado de otras señales de deterioro, puede ser un aviso temprano de alteraciones del desarrollo o de un mayor riesgo de enfermedad.
Cuando sube la temperatura de la colmena: desarrollo de la colonia, enjambrazón y estrés térmico
Un aumento de la temperatura en la colmena puede indicar varios procesos biológicos, desde el desarrollo normal de la colonia hasta la reproducción o un estrés térmico excesivo. A diferencia de un descenso sostenido en el nido de cría, que puede generar dudas sobre la capacidad de la colonia para mantener buenas condiciones de desarrollo, un aumento no puede calificarse de beneficioso o perjudicial sin tener en cuenta su momento, magnitud y duración. Respuestas térmicas parecidas pueden acompañar a acontecimientos muy distintos.
Uno de los cambios estacionales más importantes ligados al aumento de temperatura del nido es la reanudación e intensificación de la cría. En climas templados, las colonias reducen la cría en invierno y la retoman poco a poco cuando mejoran las condiciones. La cría en desarrollo necesita condiciones más estables, de modo que el paso de un estado sin cría a uno con cría se refleja en el perfil térmico del nido. Nürnberger et al. (2018) demostraron que el aumento de la temperatura ambiente puede estimular la cría en colonias en invernada, y Stalidzans y Berzonis (2013), que las mediciones de temperatura a largo plazo permiten distinguir las sucesivas fases estacionales de la colonia. Un aumento gradual seguido de temperaturas relativamente estables puede indicar, por tanto, el inicio o la expansión de la cría y no un evento anómalo.
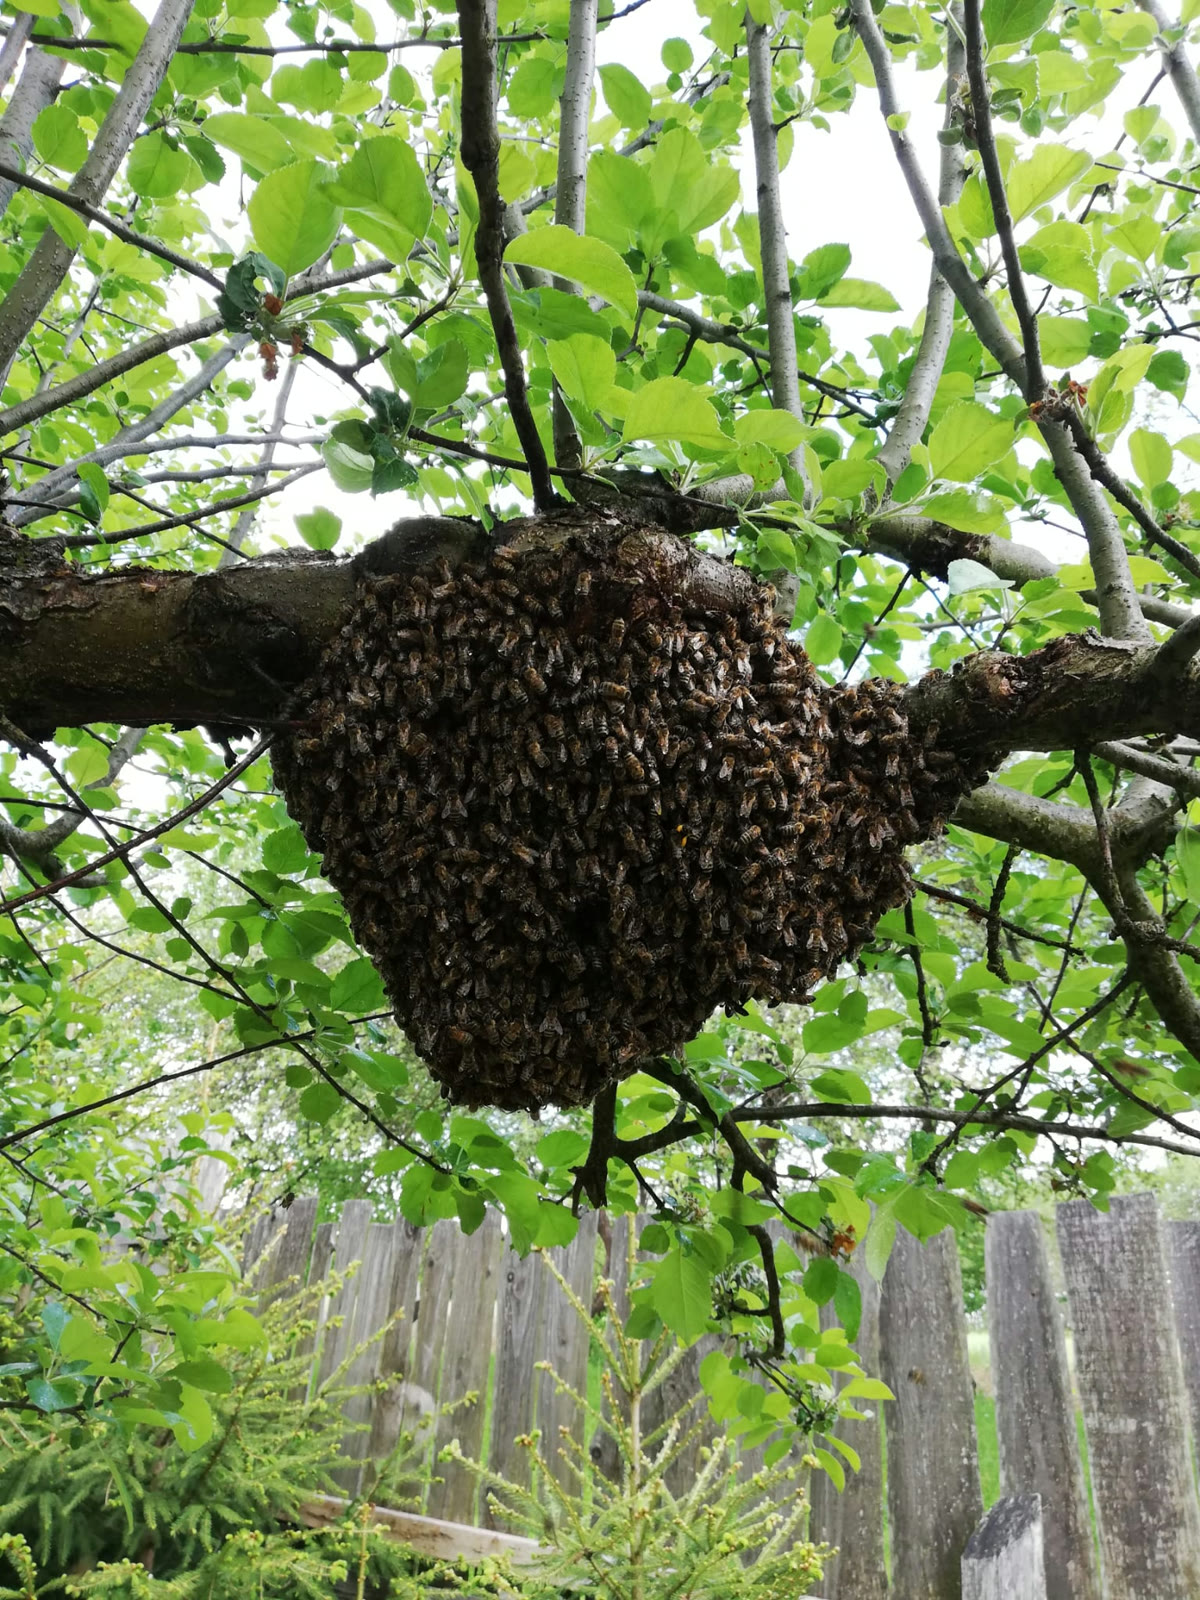
Un aumento más rápido y pasajero puede estar asociado a la enjambrazón, el proceso natural por el que una colonia se divide. Antes de la salida del enjambre, la mayor actividad de las obreras y la preparación colectiva del vuelo pueden producir una subida característica de la temperatura. Zacepins et al. (2016) observaron en diez colonias aumentos de unos 1,5 a 3,4 °C durante los últimos 8 a 20 minutos antes de la salida del enjambre. La temperatura medida sobre el nido de cría pasó de unos 34 a 35 °C a 37 a 38 °C y bajó después de que el enjambre se fuera. Ferrari et al. (2008) también describieron un aumento de temperatura acompañado de cambios en el sonido durante la enjambrazón, lo que respalda combinar mediciones térmicas y acústicas.
Se han descrito resultados parecidos en la abeja oriental (Apis cerana). Zhu et al. (2019) observaron un aumento progresivo de la temperatura antes de la enjambrazón: primero de unos 0,069 °C por minuto y después más rápido, de unos 0,314 °C por minuto. La respuesta térmica más clara se registró en un punto concreto cerca de la piquera, entre la pared de la colmena y el primer cuadro. Detectar los cambios de temperatura ligados a la enjambrazón depende, por tanto, mucho de la posición del sensor. Un sensor en el nido de cría puede captar un patrón distinto al de uno junto a la piquera o sobre los cuadros superiores.
Las temperaturas elevadas también pueden indicar exposición a un calor ambiental excesivo, sobre todo cuando el enfriamiento no basta para mantener condiciones adecuadas en el nido. En esas circunstancias, el estrés térmico prolongado puede alterar procesos fisiológicos normales y activar mecanismos celulares de protección. Las proteínas de choque térmico (HSP), entre ellas las de la familia Hsp70, protegen las proteínas celulares frente al daño causado por el calor. Alqarni et al. (2019) encontraron cambios en la expresión de estas proteínas en obreras adultas expuestas experimentalmente a 40 y 45 °C durante cuatro horas. Las respuestas variaron entre nodrizas y pecoreadoras y entre subespecies, lo que sugiere que la tolerancia al calor y la respuesta celular al estrés dependen tanto de la función en la colonia como de la genética.
El significado biológico de una temperatura elevada depende, por tanto, no solo de su valor absoluto sino también de la duración de la exposición, de la fase de desarrollo y de la capacidad de la colonia para disipar el exceso de calor. Las obreras adultas pueden tolerar mejor las altas temperaturas, pero la cría necesita condiciones más controladas. Un sobrecalentamiento sostenido puede alterar el entorno de desarrollo aunque las obreras sigan activas y la colonia parezca funcionar con normalidad al principio.
Para la apicultura de precisión, estos resultados muestran un límite fundamental: un aumento de temperatura no puede leerse como una única señal diagnóstica. Una subida gradual y sostenida puede indicar que se ha reanudado la cría, un aumento rápido y pasajero puede acompañar a la enjambrazón, y temperaturas altas prolongadas en época de calor pueden sugerir estrés térmico. Distinguir estos procesos exige tener en cuenta el patrón estacional, la temperatura ambiente, la posición del sensor y mediciones adicionales como la humedad, el sonido o el peso de la colmena. La monitorización de la temperatura aporta más cuando los cambios térmicos se leen como parte de una respuesta fisiológica y de comportamiento más amplia, y no como indicadores aislados del estado de la colonia.
Dónde colocar un sensor de temperatura en la colmena
El estudio de Zhu et al. incluye un detalle importante para quien instala sensores. La señal más clara apareció en un punto concreto, en el espacio de abeja entre la pared de la colmena y el primer cuadro del lado de la piquera (Zhu et al., 2019). La mejor posición para detectar un enjambre no es la mejor posición para vigilar la cría.
Todo lo anterior describe una variable regulada. Un termómetro en la colmena no mide esa variable. Mide la temperatura en un punto de un campo térmico espacial, y lo bien que ambas coincidan depende por completo de dónde esté ese punto.
Esto ya se sabía antes de que la electrónica hiciera cómodo olvidarlo. La termología clásica de las colonias en invernada se basó en cerca de 1,2 millones de lecturas de termopares en una sola colmena Langstroth de tamaño completo, porque una única sonda nunca iba a describir el conjunto (Owens, 1971). Los trabajos modernos llegaron a la misma conclusión con mejor equipo (Besson et al., 2021; Minaud et al., 2024b).
Lo que ofrece un sensor bien colocado es una serie temporal, y su forma contiene la mayor parte de la información (Meikle y Holst, 2015). Las colmenas usadas en polinización comercial llegan al invierno con menos abejas, menos cría, temperaturas medias más bajas y más variabilidad a lo largo del día que las colmenas con floración natural (Meikle et al., 2017).
¿Qué temperatura tiene un racimo invernal?
En verano, el nido de cría ancla el campo térmico a un lugar conocido. En invierno ese ancla desaparece, y la estructura que forma la colonia en su lugar es el caso más difícil para cualquier sistema de monitorización.
El racimo se forma cuando el aire exterior baja de unos 15 °C. Su capa externa de abejas muy apretadas está a 10 a 15 °C y nunca baja de 6,1 °C, su núcleo promedia 21,3 °C en un rango de 18 a 29 °C, y el centro, donde está la reina, se mantiene a 27 a 35 °C (Minaud et al., 2024a). Esas cifras describen una colonia en una noche. Una sonda que toca la capa externa y otra en el centro miden la colonia correctamente, y aun así diferirán en veinte grados.
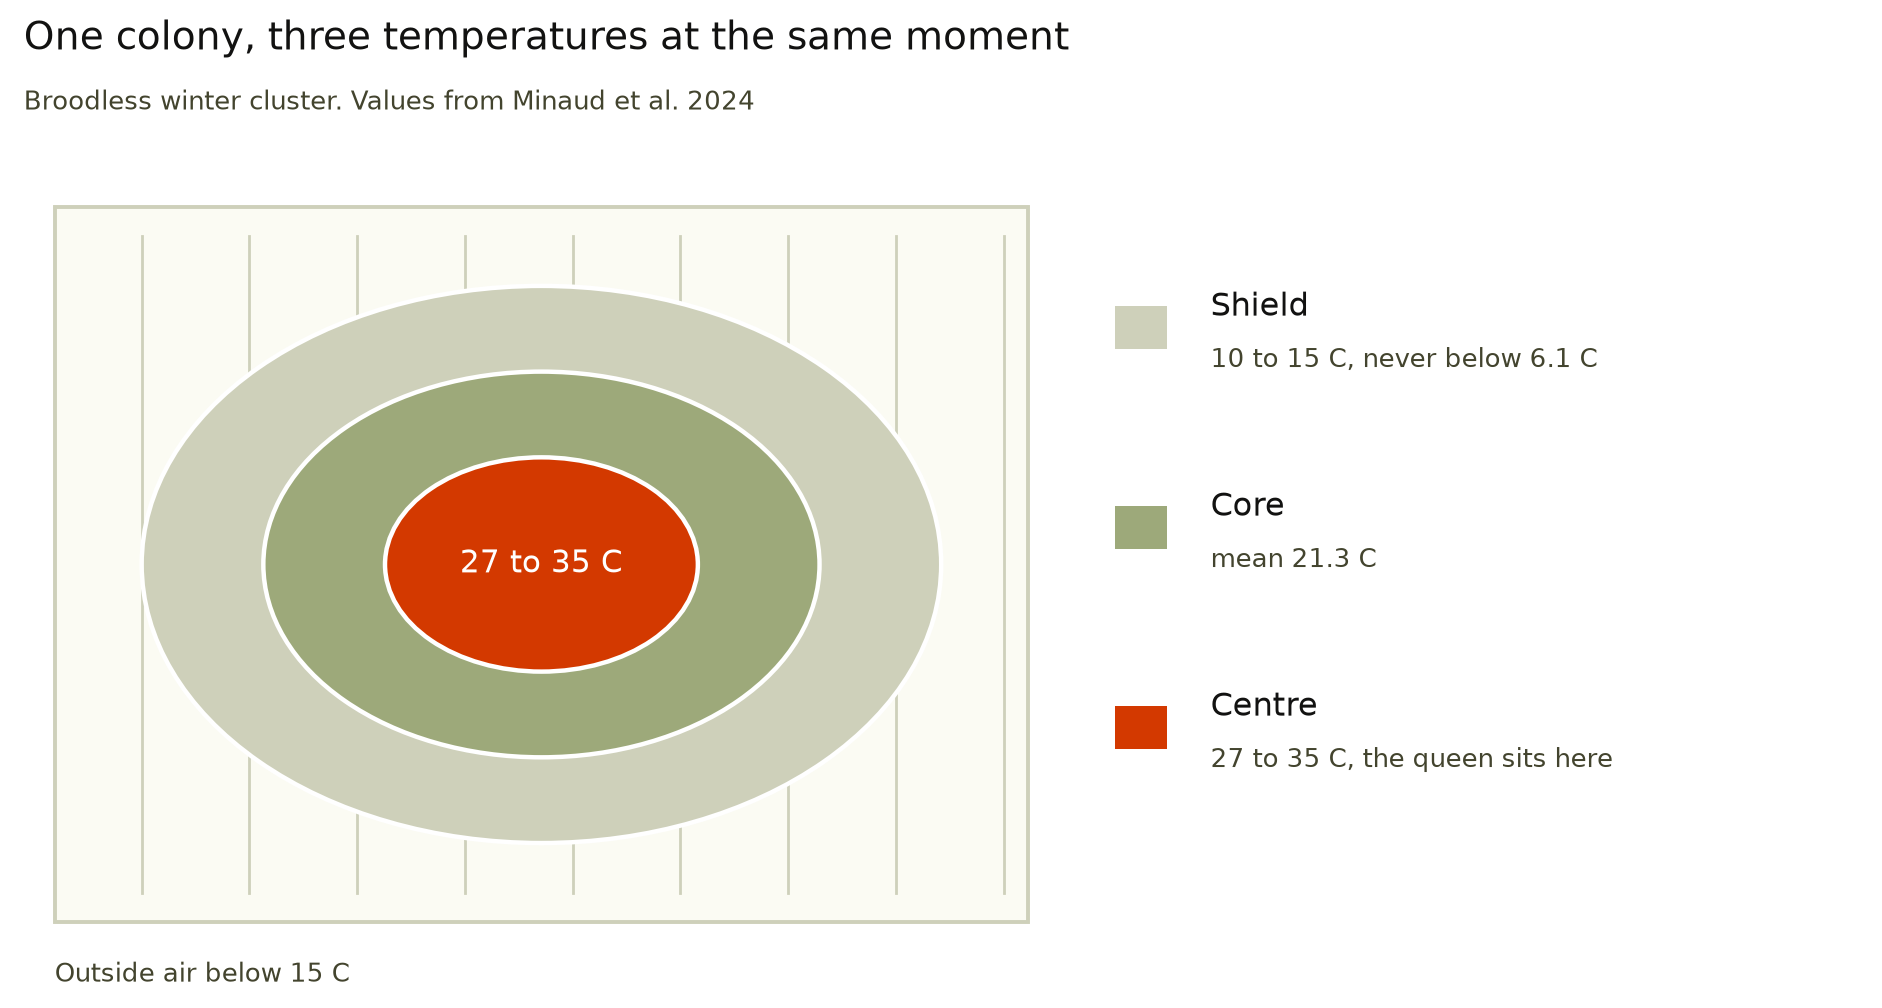
El racimo tampoco es un objeto fijo. Se contrae con el frío, se relaja cuando las condiciones dejan pasar el aire y, con una temperatura exterior por debajo de 5 °C, deja de contraerse y produce calor adicional (Minaud et al., 2024a). La distancia entre un sensor fijo y la abeja más cercana cambia, por tanto, con el tiempo, varias veces por semana.
Además, el racimo se desplaza. A lo largo del invierno se mueve, se expande y cambia de forma para seguir accediendo a las reservas de miel que aún no ha consumido (Minaud et al., 2024a). Por eso una colonia puede morir de hambre a pocos centímetros de panales llenos cuando una larga ola de frío le impide desplazarse. Para un sensor fijo, ese movimiento es idéntico a una colonia que se enfría hasta morir.
La salida es estadística y no absoluta. La amplitud térmica en el nido separa las colonias que sobreviven de las que mueren, la estabilidad de la temperatura máxima indica si hay cría, y la dispersión de temperaturas entre sensores estima cuánta cría hay (Minaud et al., 2024b). Son propiedades de una distribución, no de una lectura.
De la temperatura a la fusión de datos
Un descenso con una variabilidad diaria creciente puede preceder a una enfermedad de la cría. Pero también puede significar una reina que falla o falta, una zona de cría que se reduce, una ola de frío o un racimo que simplemente se ha alejado de la sonda. Un aumento puede significar cría, un enjambre, una ola de calor, un transporte o una colmena mal ventilada. Las respuestas térmicas se parecen y las causas no.
Otros dos efectos reducen aún más el margen. La temperatura de la colmena y la concentración de CO₂ muestran ritmos circadianos que persisten sin señales externas (Meikle y Weiss, 2025), de modo que un patrón diario tiene una línea base que no depende en absoluto de la salud de la colonia. Y los receptores térmicos de la abeja distinguen cambios de solo 0,2 °C, una cifra que se toma como objetivo de diseño para las plataformas de sensores en colmenas (Gupta et al., 2026).
La temperatura indica que el estado térmico de la colonia ha cambiado, y aproximadamente cuándo. El porqué lo puede dar un canal químicamente independiente. Los compuestos orgánicos volátiles son el candidato evidente, porque las enfermedades de la cría cambian el olor del nido antes que su aspecto, y los volátiles del aire de la colmena permiten identificar el agente de forma no invasiva (Asiri et al., 2025). Hemos escrito más sobre cómo se defienden las colonias de las enfermedades en La colmena que se protege a sí misma.
Este es el principio de diseño de la plataforma Apisense. La medición continua de la temperatura dentro de la colmena junto con gases y compuestos volátiles, posible gracias al Apisense VitalSensor, ofrece dos visiones complementarias de la misma colonia que fallan en situaciones distintas, y a un canal químico le da igual hacia dónde se haya desplazado el racimo. Bee Health Intelligence, en la práctica, significa fusionar esos canales en lugar de añadir sensores y esperar lo mejor. Los resultados sobre temperatura resumidos aquí se presentaron en la reunión anual de la investigación apícola de habla alemana en Braunschweig en marzo de 2026 (Bryś et al., 2026). La presentación generó un animado debate con investigadores y apicultores, y dio lugar a nuevos contactos y colaboraciones que hoy orientan cómo diseñamos e interpretamos nuestras mediciones de campo.
Referencias
- Alqarni, A. S., Ali, H., Iqbal, J., Owayss, A. A., & Smith, B. H. (2019). Expression of heat shock proteins in adult honey bee (Apis mellifera L.) workers under hot-arid subtropical ecosystems. Saudi Journal of Biological Sciences, 26(7), 1372 to 1376. https://pmc.ncbi.nlm.nih.gov/articles/PMC6864156
- Asiri, A., Perkins, S. E., & Müller, C. T. (2025). The smell of infection, disease surveillance in insects using volatile organic compounds. Agricultural and Forest Entomology, 27(1), 81 to 89. https://doi.org/10.1111/afe.12651
- Besson, O., et al. (2021). Bee Cluster 3D, a system to monitor the temperature in a hive over time. arXiv:2101.03125. https://arxiv.org/abs/2101.03125
- Bryś, M. S., Kądziołka, B., Stasiowska, D., Wierzbiński, M., Cibor, S. (2026) From temperature to data fusion, effective monitoring of honeybee colony health. Presented at the meeting of the German speaking bee research association, Braunschweig, March 2026.
- Bujok, B., Kleinhenz, M., Fuchs, S., & Tautz, J. (2002). Hot spots in the bee hive. Naturwissenschaften, 89, 299 to 301. https://doi.org/10.1007/s00114-002-0338-7
- Ferrari, S., Silva, M., Guarino, M., & Berckmans, D. (2008). Monitoring of swarming sounds in bee hives for early detection of the swarming period. Computers and Electronics in Agriculture, 64(1), 72 to 77. https://doi.org/10.1016/j.compag.2008.05.010
- Flores, J. M., Ruiz, J. A., Ruz, J. M., Puerta, F., Bustos, M., Padilla, F., & Campano, F. (1996). Effect of temperature and humidity of sealed brood on chalkbrood development under controlled conditions. Apidologie, 27, 185 to 192. https://www.apidologie.org/articles/apido/abs/1996/04/Apidologie_0044-8435_1996_27_4_ART0001/
- Groh, C., Tautz, J., & Rössler, W. (2004). Synaptic organization in the adult honey bee brain is influenced by brood temperature control during pupal development. PNAS, 101(12), 4268 to 4273. https://doi.org/10.1073/pnas.0400773101
- Gupta, S. D., Erickson, J., Rinehart, J., Braaten, B. D., & Eshkabilov, S. (2026). A wireless sensor platform for beehive monitoring. Sensors, 26(6), 1846. https://doi.org/10.3390/s26061846
- Heinrich, B. (1979). Thermoregulation of African and European honeybees during foraging, attack, and hive exits and returns. Journal of Experimental Biology, 80(1), 217 to 229.
- Hölldobler, B., & Wilson, E. O. (2009). The Superorganism, the Beauty, Elegance, and Strangeness of Insect Societies. W. W. Norton & Company, New York.
- Jones, J. C., Myerscough, M. R., Graham, S., & Oldroyd, B. P. (2004). Honey bee nest thermoregulation, diversity promotes stability. Science, 305(5682), 402 to 404. https://doi.org/10.1126/science.1096340
- Jones, J. C., Helliwell, P., Beekman, M., Maleszka, R., & Oldroyd, B. P. (2005). The effects of rearing temperature on developmental stability and learning and memory in the honey bee, Apis mellifera. Journal of Comparative Physiology A, 191, 1121 to 1129. https://doi.org/10.1007/s00359-005-0035-z
- Kleinhenz, M., Bujok, B., Fuchs, S., & Tautz, J. (2003). Hot bees in empty broodnest cells, heating from within. Journal of Experimental Biology, 206(23), 4217 to 4231. https://doi.org/10.1242/jeb.00680
- Meikle, W. G., & Holst, N. (2015). Application of continuous monitoring of honeybee colonies. Apidologie, 46(1), 10 to 22. https://doi.org/10.1007/s13592-014-0298-x
- Meikle, W. G., Weiss, M., Maes, P. W., et al. (2017). Internal hive temperature as a means of monitoring honey bee colony health in a migratory beekeeping operation before and during winter. Apidologie. https://doi.org/10.1007/s13592-017-0512-8
- Meikle, W. G., & Weiss, M. (2025). Temperature and CO2 concentration in honey bee hives exhibit circadian rhythms. Scientific Reports, 15. https://doi.org/10.1038/s41598-025-03614-3
- Minaud, É., Rebaudo, F., Davidson, P., Hatjina, F., Hotho, A., Mainardi, G., Steffan-Dewenter, I., Vardakas, P., Verrier, P., & Requier, F. (2024a). How stressors disrupt honey bee biological traits and overwintering mechanisms. Heliyon, 10(14), e34390. https://doi.org/10.1016/j.heliyon.2024.e34390
- Minaud, É., Rebaudo, F., Mainardi, G., Vardakas, P., Hatjina, F., Steffan-Dewenter, I., & Requier, F. (2024b). Temperature in overwintering honey bee colonies reveals brood status and predicts colony mortality. Ecological Indicators, 112961. https://doi.org/10.1016/j.ecolind.2024.112961
- Mráz, P., Hýbl, M., Kopecký, M., Bohatá, A., Konopická, J., Hoštičková, I., Konvalina, P., Šipoš, J., Rost, M., & Čurn, V. (2021). The effect of artificial media and temperature on the growth and development of the honey bee brood pathogen Ascosphaera apis. Biology, 10(5), 431. https://doi.org/10.3390/biology10050431
- Nürnberger, F., Härtel, S., & Steffan-Dewenter, I. (2018). The influence of temperature and photoperiod on the timing of brood onset in hibernating honey bee colonies. PeerJ, 6, e4801. https://doi.org/10.7717/peerj.4801
- Owens, C. D. (1971). The thermology of wintering honey bee colonies. USDA Technical Bulletin 1429. https://ageconsearch.umn.edu/record/171857
- Seeley, T. D. (1989). The honey bee colony as a superorganism. American Scientist, 77(6), 546 to 553. https://www.semanticscholar.org/paper/c718628d4e61fe781ac0ddf5e5ae26d8245f1495
- Stabentheiner, A., Pressl, H., Papst, T., Hrassnigg, N., & Crailsheim, K. (2003). Endothermic heat production in honeybee winter clusters. Journal of Experimental Biology, 206(2), 353 to 358. https://journals.biologists.com/jeb/article/206/2/353/13914/
- Stabentheiner, A., Kovac, H., & Brodschneider, R. (2010). Honeybee colony thermoregulation, regulatory mechanisms and contribution of individuals in dependence on age, location and thermal stress. PLoS ONE, 5(1), e8967. https://doi.org/10.1371/journal.pone.0008967
- Stabentheiner, A., Kovac, H., Mandl, M., & Käfer, H. (2021). Coping with the cold and fighting the heat, thermal homeostasis of a superorganism, the honeybee colony. Journal of Comparative Physiology A, 207(3), 337 to 351. https://doi.org/10.1007/s00359-021-01464-8
- Stalidzans, E., & Berzonis, A. (2013). Temperature changes above the upper hive body reveal the annual development periods of honey bee colonies. Computers and Electronics in Agriculture, 90, 1 to 6. https://doi.org/10.1016/j.compag.2012.10.003
- Tautz, J., Maier, S., Groh, C., Rössler, W., & Brockmann, A. (2003). Behavioral performance in adult honey bees is influenced by the temperature experienced during their pupal development. PNAS, 100(12), 7343 to 7347. https://doi.org/10.1073/pnas.1232346100
- von Knoblauch, T., Jensen, A. B., Mülling, C. K. W., Aupperle-Lellbach, H., & Genersch, E. (2024). Chalkbrood disease caused by Ascosphaera apis in honey bees, morphological and histological changes in infected larvae. Veterinary Sciences, 11, 415. https://doi.org/10.3390/vetsci11090415
- Zacepins, A., Kviesis, A., Stalidzans, E., Liepniece, M., & Meitalovs, J. (2016). Remote detection of the swarming of honey bee colonies by single point temperature monitoring. Biosystems Engineering, 148, 76 to 80. https://doi.org/10.1016/j.biosystemseng.2016.05.012
- Zhu, X., Wen, X., Zhou, S., Xu, X., Zhou, L., & Zhou, B. (2019). The temperature increase at one position in the colony can predict honey bee swarming (Apis cerana). Journal of Apicultural Research, 58(4). https://doi.org/10.1080/00218839.2019.1632149